 東京大学 研究
変動する弱い光を効率よく利用し、植物成長を促進
――光合成電子伝達を調節するPGR5タンパク質の適度な増加が鍵――
【注目の成果:共同研究・産学連携のためのチェックポイント】
 | 光合成関連タンパク質を単純に増やすのではなく、生育環境に応じてその量を最適化することの重要性を示すものであり、将来的には自然界の変動する光を効率よく利用できる高生産性作物の開発につながることが期待 |
【産学連携対象 全学共通分野 Discovery Saga】
【Sagaキーワード】
最適化/光エネルギー/酸化還元状態/太陽/キノン/光化学/ATP合成/アブラナ科/クロロフィル/シトクロム/タンパク質複合体/チラコイド膜/光化学系I/光化学系II/光合成/光阻害/植物群落/電子伝達/変動光/葉緑体/光環境/クロム/酸化還元/生産性/二酸化炭素/有機物/CO2固定/遺伝子改変/変異体/シロイヌナズナ/トマト/イネ/バイオマス/プロトン/ATP/遺伝子
発表のポイント
◆自然環境では植物が受ける光は絶えず変化しており、光合成電子伝達を制御するPGR5タンパク質がこのような変動光環境への応答に重要ですが、植物の光合成や成長にとってどの程度のPGR5量が最適なのかは十分に分かっていませんでした。◆ PGR5量の異なるシロイヌナズナを比較した結果、強い変動光条件ではPGR5増加による明確な成長促進効果はみられなかった一方、弱い変動光条件ではPGR5を野生型の約2倍に増やすことで、光化学系Iの酸化還元状態が適切に調節され、植物成長が促進されることを明らかにしました。
◆ 本成果は、光合成関連タンパク質を単純に増やすのではなく、生育環境に応じてその量を最適化することの重要性を示すものであり、将来的には自然界の変動する光を効率よく利用できる高生産性作物の開発につながることが期待されます。
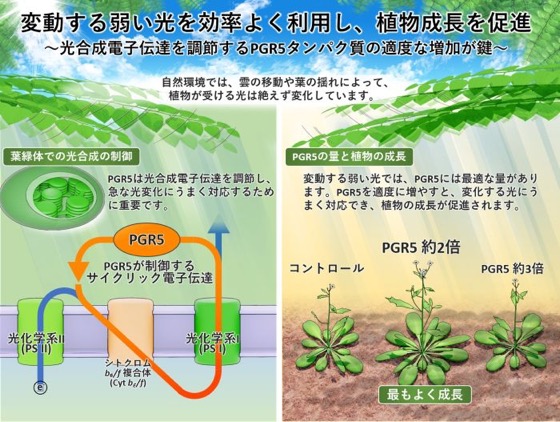 PGR5量の最適化による変動光環境下での光合成と植物成長の向上
発表概要
東京大学大学院農学生命科学研究科の谷川 慶一郎 大学院生(博士課程)、兒玉 大昌 大学院生(博士課程)、矢守 航 准教授らの研究グループは、岡山大学資源植物科学研究所の桶川 友季 准教授、京都大学大学院理学研究科の鹿内 利治 名誉教授との共同研究により、光合成電子伝達(注1)を制御するタンパク質「PROTON GRADIENT REGULATION 5(PGR5、注2)」の量が、変動する光環境における光合成と植物成長を左右することを明らかにしました。自然環境では、雲の移動や葉の揺れ、周囲の葉による遮蔽などによって、植物が受ける光は絶えず変化しています。PGR5は、このような変動光環境(注3)で光化学系I(PSI、注4)周辺のhttps://www.a.u-tokyo.ac.jp/wp-admin/edit.php?category_name=ad-list 電子伝達を調節する重要なタンパク質ですが(図1)、植物にとってどの程度のPGR5量が最適なのかは十分に分かっていませんでした。
本研究では、PGR5量の異なる複数のシロイヌナズナを比較しました。その結果、光強度の変化が大きい条件では、PGR5を欠損した植物で光合成機能と成長が大きく低下した一方、PGR5量を野生型以上に増やしても明確な成長促進効果は認められませんでした。これに対して、弱い光を中心とした変動光条件では、PGR5を野生型の約2倍蓄積する植物でPSIの酸化還元状態(注5)が適切に調節され、機能的なPSI量の指標であるPmや植物の乾燥重量が増加しました。一方、PGR5を約3倍まで増加させた植物では、約2倍の植物でみられたPmや植物成長の向上がみられなくなり、野生型と同程度になりました。 このことから、弱い変動光環境ではPGR5は多ければ多いほどよいのではなく、光合成と植物成長を最大化するための最適なPGR5量が存在することが示されました。
これらの結果から、強い光変動ではPGR5の存在そのものが光合成機能の維持に重要である一方、弱い光変動ではPGR5の「量」が重要であり、適度な増加によって光合成機能と植物成長が向上するものの、過剰に増加させるとその効果が失われることが明らかになりました。本成果は、PGR5を単純に増やすのではなく、生育する光環境に応じてその量を最適化するという、新たな光合成改良戦略につながることが期待されます。
発表内容
植物が自然環境で受ける光は一定ではなく、雲の移動や葉の揺れ、周囲の葉による遮蔽などによって絶えず変化しています。特に植物群落の内部では、弱い光が長く続く中に一時的に強い光が差し込むことが多く、このような光の変化に素早く対応できるかどうかが、植物の光合成や成長を左右します。植物の光合成では、光化学系II(PSII、注6)から光化学系I(PSI)へ電子が流れる「リニア電子伝達」(注7)に加え、PSI周辺で電子を循環させる「サイクリック電子伝達」(注8)が働いています。サイクリック電子伝達は、ATP(注9)とNADPH(注10)のバランス調節や、光合成装置を過剰な光から守る働きに重要です(図1)。PGR5は、このPSI周辺の電子伝達を調節する重要なタンパク質です。
これまで、PGR5を欠損した植物では、変動光環境下で光合成機能や生育が大きく低下することが知られていました(Suorsa et al., 2012; Kono et al., 2014)。一方、PGR5を過剰に蓄積させると、光合成制御や生育に悪影響を及ぼす場合があることも報告されています(Okegawa et al., 2007)。しかし、PGR5をどの程度増やすことが植物の光合成や成長にとって最も有利なのかは十分に分かっていませんでした。
そこで研究グループは、PGR5タンパク質量の異なる複数のシロイヌナズナを用いて、低い光強度と高い光強度に対する短期的な光合成応答と、それぞれに対応する変動光環境での長期的な植物成長を比較しました。
PGR5量は系統間で大きく異なる一方、他の主要な光合成タンパク質量はほぼ一定
研究グループはまず、PGR5を欠損したpgr5-5 変異体と、PGR5タンパク質量が野生型の約半分、約2倍、約3倍となる複数の系統を比較しました(図2)。PGR5タンパク質量は系統によって大きく異なっていましたが、光合成電子伝達を担うシトクロムb6/f 複合体(注11)の構成タンパク質PetCや、CO₂固定を担う酵素Rubisco(注12)の量には、系統間で大きな違いは認められませんでした。このことから、これらの系統を用いることで、PGR5タンパク質量の違いと光合成機能・植物成長との関係を比較することができました。強い光に対する光合成の立ち上がりではPGR5を欠くと光合成応答が大きく低下
まず、10 µmol photons m-2 s-1から600 µmol photons m⁻² s⁻¹へ光強度を上昇させ、光合成誘導(注13)期と定常状態におけるPSI・PSIIの応答を解析しました(図4)。その結果、PGR5を欠損したpgr5-5 変異体では、PSIおよびPSIIの電子伝達に関わる指標が大きく低下しました。また、PSIのアクセプター側制限を示すY(NA)(注14)が高くなり、PSIが過剰に還元されやすい状態になっていました。一方、PGR5を持つ植物の間では、PGR5量を野生型以上に増加させても、600 µmol photons m-2 s-1条件で光合成機能がさらに向上する明確な効果は認められませんでした。
つまり、高い光強度への変化では、PGR5量の細かな違いよりも、PGR5が存在するかどうかによる影響が大きいことが示されました。
弱い光に対する光合成の立ち上がりではPGR5の「量」が光合成応答を左右
次に、10 µmol photons m-2 s-1から100 µmol photons m-2 s-1へ光強度を上昇させた場合について解析しました(図3)。この条件では、600 µmol photons m-2 s-1の場合と比べて、PGR5タンパク質量の違いに応じたPSIの応答がより明瞭に現れました。PGR5を欠損したpgr5-5 変異体では、PSIの電子伝達制御が大きく乱れ、PSIのアクセプター側制限を示すY(NA)(注14)が高くなりました。一方、PGR5を適度に増加させると、PSIのドナー側制限を示すY(ND)が高まり、Y(NA)が低下するなど、PSIの酸化還元状態がより適切に調節されました。これは、PSIへの電子流入が適切に制御され、PSIが過剰に還元されるのを防ぐ方向に光合成電子伝達が調節されていることを示します。
特に、PGR5を野生型の約2倍蓄積する系統では、PSIの酸化還元状態が良好に調節されました。 一方、PGR5を約3倍まで増加させると、約2倍の系統でみられた優位性は失われ、光合成応答は野生型と同程度になりました。また、PGR5量が多い系統では、PSIIの最大量子収率Fv/Fm(注15)の低下や、PSII電子伝達の立ち上がりの遅れ、非光化学的消光(NPQ;注16)の増加も認められました。
これらの結果から、比較的弱い光の条件では、PGR5は多ければ多いほどよいのではなく、光合成機能を最も効率よく発揮するための最適なPGR5量が存在することが示されました。
弱い変動光ではPGR5の適度な増加が植物成長を促進
次に、PGR5量の違いが長期的な植物成長に及ぼす影響を調べるため、弱い変動光と強い変動光の条件で3週間栽培しました。 10 µmol photons m-2 s-1と100 µmol photons m-2 s-1を10分ごとに切り替える弱い変動光条件では、PGR5を野生型の約2倍蓄積する系統で、地上部乾燥重量が最も大きくなりました(図5)。また、この系統では、機能的なPSI量の指標であるPm(注18)も最も高くなりました。一方、PGR5を約3倍まで増加させると、約2倍の系統でみられた乾燥重量やPmの増加はみられなくなり、野生型と同程度となりました。つまり、PGR5は多ければ多いほど光合成機能や植物成長が向上するわけではなく、弱い変動光環境では、光合成機能と植物成長を高めるための最適なPGR5量が存在することが示されました。
さらに、弱い変動光条件と同じ日積算光量(注17)を与えた定常条件では、系統間で地上部乾燥重量に明確な差は認められませんでした。このことから、PGR5を適度に増加させる効果は、単に受け取る光の総量によるものではなく、弱い光を中心として光強度が繰り返し変化する環境で特に発揮されることが示されました。
強い変動光ではPGR5の欠損によって光合成機能と成長が大きく低下
一方、10 µmol photons m-2 s-1と600 µmol photons m-2 s-1を10分ごとに切り替える強い変動光条件では、PGR5を欠損したpgr5-5 変異体で地上部乾燥重量が大きく低下しました。また、PSIIの最大量子収率Fv/Fmと、機能的なPSI量の指標であるPmも低下しました(図6)。これに対して、PGR5を持つ植物の間では、PGR5量を野生型以上に増加させても、光合成機能や植物成長がさらに向上する明確な効果は認められませんでした。したがって、強い変動光環境では、PGR5量の細かな違いよりも、PGR5が存在すること自体が光合成機能と植物成長を維持するために重要であることが示されました。
以上の結果から、PGR5の役割は光環境によって異なり、強い変動光ではPGR5の存在そのものが重要である一方、弱い変動光ではPGR5の「量」が重要であり、野生型の約2倍程度への適度な増加によって光合成機能と植物成長が向上することが明らかになりました。さらにPGR5量を増やすとこの効果が失われることから、PGR5には光合成と植物成長を高めるための最適な量が存在することが示されました。
今後の展望
本研究により、PGR5の光合成や植物成長への効果は光環境によって異なり、PGR5を単純に増やせばよいのではなく、光合成機能と植物成長を高めるための最適な量が存在することが示されました。特に、弱い光を中心とした変動光環境では、PGR5を適度に増加させることで光合成電子伝達が適切に調節され、植物成長が促進されることが明らかになりました。自然界では、植物は常に十分な強い光を受けているわけではありません。特に作物群落の内部では、上位の葉による遮蔽や葉の揺れ、太陽の移動などによって、弱い光を中心に光強度が絶えず変化しています。そのため、こうした変動する弱い光を効率よく利用できる能力を高めることは、実際の農業環境における作物生産性の向上につながる可能性があります。
本成果は、光合成関連タンパク質を単純に増やすのではなく、生育環境に応じてその量を最適化するという新たな作物改良の考え方を示すものです。将来的には、ナタネなどのアブラナ科作物をはじめ、イネやトマトなどの主要作物においてPGR5量を適切に制御する育種や遺伝子改変技術へ応用することで、変動する弱い光をより効率よく利用し、限られた光資源からより多くのバイオマスや収量を得られる高生産性作物の開発につながることが期待されます。
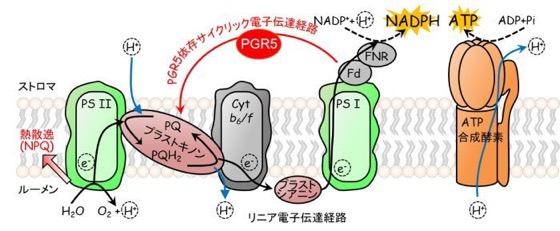 図1. 光合成の電子伝達経路とPGR5の役割
葉緑体のチラコイド膜における光合成電子伝達の模式図。光化学系II(PSII)で受け取られた電子は、プラストキノン(PQ)、シトクロム b₆/f 複合体(Cyt b6/f)を経て光化学系I(PSI)へと運ばれ、最終的にNADPHの生成に利用されます。一方、PGR5は、PSIからの電子を再びPQ側へ戻すPSIサイクリック電子伝達の制御に関わります。このサイクリック電子伝達は、チラコイド膜を隔てたプロトン濃度勾配(ΔpH)の形成を促し、ATP合成を支えるとともに、余剰な光エネルギーを熱として散逸する非光化学的消光(NPQ)を誘導します。さらに、シトクロム b₆/f複合体を介したPSIへの電子流入を調節することで、PSIの過剰な還元を防ぎ、光による損傷からPSIを保護します。
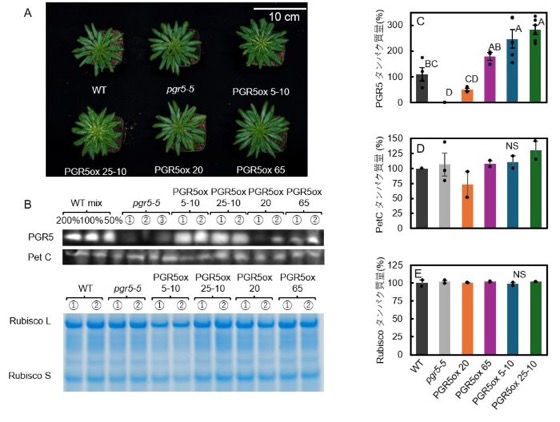 図2. PGR5量の異なるシロイヌナズナにおける光合成関連タンパク質の蓄積量
(A)野生型(WT)、PGR5をほとんど持たない pgr5-5 変異体、およびPGR5量の異なるPGR5発現系統(PGR5ox 5-10、PGR5ox 25-10、PGR5ox 20、PGR5ox 65)の播種6週間後の外観。スケールバーは10 cm。
(B)各系統における光合成関連タンパク質の解析。上段はPGR5、中段はシトクロム b₆f 複合体の構成タンパク質PetCのウェスタンブロッティング画像、下段はRubiscoを含むタンパク質のCBB染色像を示す。定量の基準として、WT試料の混合物を200%、100%、50%に希釈して用いた。①~③は独立した個体を示す。Rubisco LおよびRubisco Sは、それぞれRubiscoの大サブユニットと小サブユニットを示す。
(C–E)PGR5(C)、PetC(D)、Rubisco(E)の相対蓄積量。WTを100%として示した。左から野生型(WT)、pgr5-5、PGR5ox 20、PGR5ox 65、PGR5ox 5-10、PGR5ox 25-10。PGR5量は系統間で大きく異なった一方、PetCおよびRubisco量には大きな違いは認められなかった。 棒グラフは平均値、エラーバーは標準誤差、黒点は個々の測定値を示す。異なるアルファベットは統計的に有意な差(P < 0.05)を、NSは有意差がないことを示す。
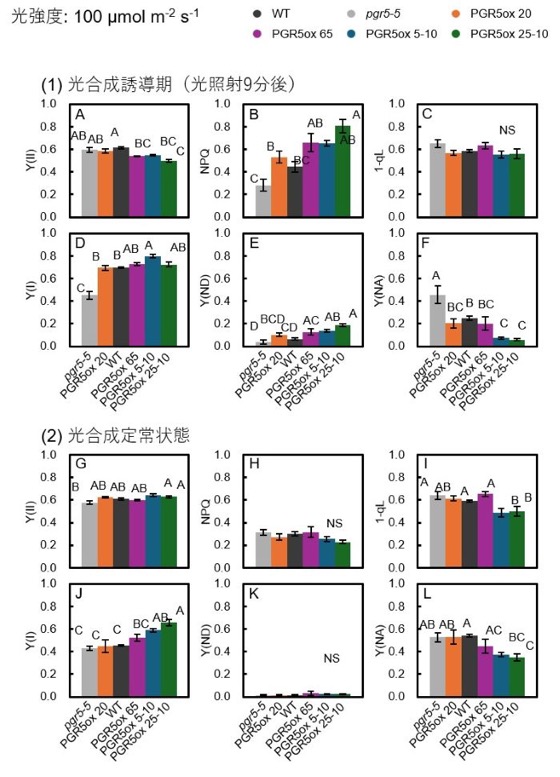 図3.低光強度(100 µmol photons m⁻² s⁻¹)における光合成誘導期および定常状態の光合成特性
上段は光合成誘導期(光強度上昇9分後)、下段は光合成定常状態における測定値を示す。 (A, G)光化学系II(PSII)の実効量子収率[Y(II)]、(B, H)非光化学的消光(NPQ)、(C, I)PSIIの還元状態の指標(1-qL)、(D, J)光化学系I(PSI)の実効量子収率[Y(I)]、(E, K)PSIのドナー側制限[Y(ND)]、(F, L)PSIのアクセプター側制限[Y(NA)]。左からpgr5-5、PGR5ox 20、野生型(WT)、PGR5ox 65、PGR5ox 5-10、PGR5ox 25-10。
Y(ND)は、PSIへの電子流入が制限されてP700が酸化状態に保たれている程度を示し、光合成制御によるPSI保護の指標となる。一方、Y(NA)はPSIの下流へ電子を受け渡せず、アクセプター側が過剰に還元されている程度を示す。Y(NA)が高いほどPSIが過還元状態となり、光障害を受けやすい状態にあることを示す。
棒グラフは平均値、エラーバーは標準誤差を示す。異なるアルファベットは統計的に有意な差(P < 0.05)を、NSは有意差がないことを示す。各系統の凡例は図上部に示した。
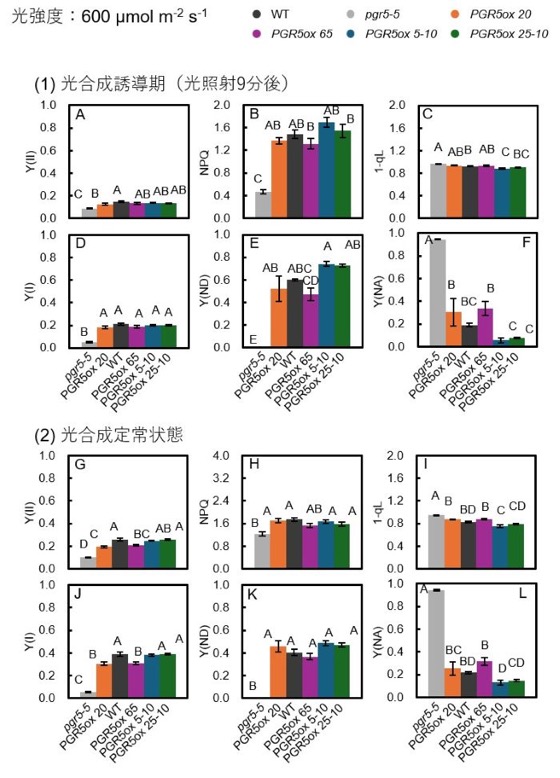 図4.高光強度(600 µmol photons m⁻² s⁻¹)における光合成誘導期および定常状態の光合成特性
上段は光合成誘導期(光強度上昇9分後)、下段は光合成定常状態における測定値を示す。
(A, G)光化学系II(PSII)の実効量子収率[Y(II)]、(B, H)非光化学的消光(NPQ)、(C, I)PSIIの還元状態の指標(1-qL)、(D, J)光化学系I(PSI)の実効量子収率[Y(I)]、(E, K)PSIのドナー側制限[Y(ND)]、(F, L)PSIのアクセプター側制限[Y(NA)]。左からpgr5-5、PGR5ox 20、野生型(WT)、PGR5ox 65、PGR5ox 5-10、PGR5ox 25-10。
Y(ND)は、PSIへの電子流入が制限されてP700が酸化状態に保たれている程度を示し、光合成制御によるPSI保護の指標となる。一方、Y(NA)はPSIの下流へ電子を受け渡せず、アクセプター側が過剰に還元されている程度を示す。Y(NA)が高いほどPSIが過還元状態となり、光障害を受けやすい状態にあることを示す。
棒グラフは平均値、エラーバーは標準誤差を示す。異なるアルファベットは統計的に有意な差(P < 0.05)を、NSは有意差がないことを示す。各系統の凡例は図上部に示した。
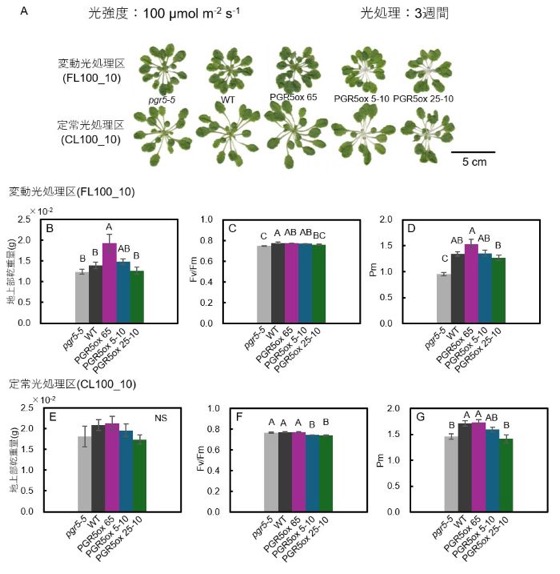 図5.弱い変動光および対応する非変動光条件における植物成長と光合成機能
(A)弱い変動光条件(FL100_10、上段)および対応する非変動光条件(CL100_10、下段)で3週間生育させた各系統の外観。FL100_10では、10 µmol photons m⁻² s⁻¹と100 µmol photons m⁻² s⁻¹の光を10分ごとに繰り返した。CL100_10では、FL100_10と同じ総光量となるように光を変動させずに照射した。左から pgr5-5、野生型(WT)、PGR5ox 65、PGR5ox 5-10、PGR5ox 25-10。スケールバーは5 cm。
(B–D)弱い変動光条件、(E–G)非変動光条件における、地上部乾燥重量(B, E)、光化学系II(PSII)の最大量子収率(Fv/Fm;C, F)、およびP700の最大酸化可能量(Pm;D, G)。Pmは機能的な光化学系I(PSI)量の指標となる。
弱い変動光条件では、PGR5を野生型の約2倍蓄積するPGR5ox 65で地上部乾燥重量が最も大きくなった。一方、対応する非変動光条件では、系統間で乾燥重量に明確な差は認められなかった。
棒グラフは平均値、エラーバーは標準誤差を示す。異なるアルファベットは統計的に有意な差(P < 0.05)を、NSは有意差がないことを示す。
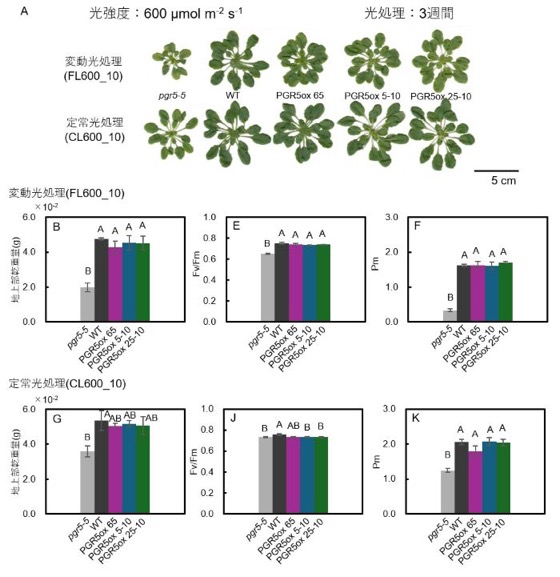 図6.強い変動光および対応する非変動光条件における植物成長と光合成機能
(A)強い変動光条件(FL600_10、上段)および対応する非変動光条件(CL600_10、下段)で3週間生育させた各系統の外観。FL600_10では、10 µmol photons m⁻² s⁻¹と600 µmol photons m⁻² s⁻¹の光を10分ごとに繰り返した。CL600_10では、FL600_10と同じ総光量となるように光を変動させずに照射した。左から pgr5-5、野生型(WT)、PGR5ox 65、PGR5ox 5-10、PGR5ox 25-10。スケールバーは5 cm。
(B–D)強い変動光条件、(E–G)非変動光条件における、地上部乾燥重量(B, E)、光化学系II(PSII)の最大量子収率(Fv/Fm;C, F)、およびP700の最大酸化可能量(Pm;D, G)。Pmは機能的な光化学系I(PSI)量の指標となる。
PGR5をほとんど持たない pgr5-5 では、強い変動光条件で地上部乾燥重量、Fv/FmおよびPmが大きく低下した。一方、PGR5を持つ植物では、PGR5量を野生型以上に増加させても明確な成長促進効果は認められなかった。
棒グラフは平均値、エラーバーは標準誤差を示す。異なるアルファベットは統計的に有意な差(P < 0.05)を、NSは有意差がないことを示す。
発表者・研究者等情報
東京大学大学院農学生命科学研究科
谷川 慶一郎 大学院生(博士課程)
兒玉 大昌 大学院生(博士課程)
矢守 航 准教授
岡山大学
資源植物科学研究所
桶川 友季 准教授
京都大学
大学院理学研究科
鹿内 利治 名誉教授
論文情報
雑誌名:The Plant Journal題名:Moderate overexpression of PROTON GRADIENT REGULATION 5 improves photosynthetic performance and plant growth under fluctuating low light in Arabidopsis thaliana
著者名:Keiichiro Tanigawa, Hiromasa Kodama, Yuki Okegawa, Toshiharu Shikanai, Wataru Yamori DOI: 10.1111/tpj.71120
URL:https://doi.org/10.1111/tpj.71120
研究助成
本研究は、日本学術振興会 科学研究費助成事業 基盤研究(B)(課題番号:21H02171)、科学技術振興機構(JST)ALCA-Next(課題番号:JPMJAN25D2)、および日本科学協会 笹川科学研究助成(課題番号:2024-4013)の支援を受けて実施されました。用語解説
(注1)光合成電子伝達植物が吸収した光エネルギーを利用して、葉緑体内で電子を受け渡していく反応。ATPやNADPHをつくり、CO₂固定に必要なエネルギーを供給する。
(注2)PGR5(PROTON GRADIENT REGULATION 5)
葉緑体のチラコイド膜に存在し、PSI周辺の電子伝達やプロトン濃度勾配の形成を調節するタンパク質。変動光環境におけるPSIの保護や光合成電子伝達の調節に重要な役割を持つ。
(注3)変動光環境
雲の移動、風による葉の揺れ、植物群落内での葉による遮蔽などによって、植物が受ける光の強さが時間的に変化する環境。 (注4)光化学系I(PSI)
光合成電子伝達を担うタンパク質複合体の一つ。光エネルギーを利用して電子を高いエネルギー状態にし、最終的なNADPH生成につながる反応を担う。
(注5)酸化還元状態
電子を受け取っている状態(還元状態)と、電子を失っている状態(酸化状態)のバランス。PSIが過度に還元されると光障害を受けやすくなる。
(注6)光化学系II(PSII)
光合成電子伝達の上流に位置するタンパク質複合体。光エネルギーを利用して水から電子を取り出し、電子伝達反応を開始する。 (注7)リニア電子伝達
PSIIからプラストキノン、シトクロム b6/f 複合体、PSIを経て電子が流れ、最終的にNADPHを生成する電子伝達経路。ATPの合成にも寄与する。
(注8)サイクリック電子伝達
PSIから受け渡された電子の一部を再び電子伝達鎖へ戻す経路。NADPHを追加で生成せずにプロトン濃度勾配を形成し、ATP生成や光合成装置の保護に寄与する。
(注9)ATP
細胞内でエネルギーの受け渡しに使われる物質。光合成ではCO₂固定などの反応を進めるためのエネルギー源として利用される。
(注10)NADPH
光合成電子伝達によって生成される還元力を持つ物質。CO₂から糖などの有機物を合成する反応に利用される。
(注11)シトクロムb6/f 複合体
PSIIとPSIの間で電子を受け渡すタンパク質複合体。電子伝達とともにプロトン濃度勾配の形成にも関与し、PSIへ流れ込む電子量の調節にも重要な役割を持つ。
(注12)Rubisco
植物の光合成においてCO₂固定を担う主要な酵素。大気中のCO₂を有機物へ取り込む反応の入口を担う。
(注13)光合成誘導
暗い状態や弱い光の状態からより明るい状態へ移行した際に、光合成機能が徐々に活性化し、新しい光環境に適応していく過程。 (注14)Y(ND)とY(NA)
PSIの酸化還元状態を示す指標。Y(ND)はPSIへの電子流入が制限され、PSIの反応中心P700が酸化状態に保たれている程度を示す。一方、Y(NA)はPSIの下流へ電子を受け渡せず、アクセプター側が還元されている程度を示し、値が高いほどPSIが過剰に還元された状態にあることを意味する。
(注15)Fv/Fm
PSIIが光エネルギーを利用できる最大効率を示す代表的な指標。値の低下はPSIIの機能低下や光阻害の指標として用いられる。 (注16)非光化学的消光(NPQ)
植物が吸収した光エネルギーのうち、光合成に利用しきれない余剰エネルギーを熱として安全に放散する仕組み。過剰な光から光合成装置を守る働きを持つ。
(注17)日積算光量
植物が1日の間に受け取った光の総量。瞬間的な光強度が異なっていても、1日を通じた総光量をそろえることで、光の「量」と「変動パターン」の影響を区別できる。
(注18)P700・Pm
P700はPSIの反応中心を構成するクロロフィル。PmはP700を最大限酸化したときに得られるシグナルで、機能的なPSI量を評価する指標として用いられる。
問い合わせ先
<研究内容については発表者にお問合せください>東京大学 大学院農学生命科学研究科 附属生態調和農学機構
准教授 矢守 航(やもり わたる)
TEL:070-6442-9511
E-mail:yamori@g.ecc.u-tokyo.ac.jp
東京大学大学院農学生命科学研究科・農学部
事務部 総務課総務チーム広報情報担当
TEL:03-5841-5484 FAX:03-5841-5028
E-mail:koho.a@gs.mail.u-tokyo.ac.jp